Agrégation physique externe 2025, épreuve 3Sujet et rapport du jury
Agrégation externe section physique-chimie option physique - Sujet de la troisième épreuve écrite de la session 2025
- Magnétostatique et matériaux magnétiques
- Mécanique : équilibre, énergie potentielle, oscillateur harmonique
- Fluctuations thermiques et mouvement brownien
- Analyse de Fourier
- Optique : formation d'image et diffraction
- Méthodes statistiques : moyenne, variance, moindres carrés
- Physique statistique : système à deux niveaux, facteur de Boltzmann
- Thermodynamique : entropie et énergie libre
- Élasticité et mécanique des milieux continus

Explorer les annales
Téléchargements
- Corrigé : pas encore disponible
Présentation du sujet
DifficilePinces magnétiques et élasticité d'une molécule d'ADN uniqueAfficher ou masquer la section
Présentation du sujet
DifficileLe problème étudie la manipulation d'une molécule d'ADN fixée entre une lame de verre et une bille magnétique soumise à un champ extérieur. Il analyse d'abord le dispositif expérimental (piégeage magnétique, mesure de force par les fluctuations browniennes, mesure de position par imagerie), puis l'élasticité entropique de l'ADN par la physique statistique d'une chaîne librement jointe. Il se termine par un modèle de tige élastique et la longueur de persistance. Le sujet compte 66 questions.
- 1Partie A : fonctionnement du dispositifChamp créé par deux aimants et force sur une bille super-paramagnétique, mesure de la force par un modèle de pendule inversé, fluctuations thermiques et analyse de Fourier, mesure de position par diffraction et moindres carrés avec un code Python à compléter.
- 2Partie B : élasticité de l'ADNExploitation de données montrant un régime élastique, élasticité entropique d'une chaîne librement jointe à une puis trois dimensions, lecture thermodynamique en termes d'entropie et d'énergie libre.
- 3Partie C : modélisation du polymère comme une tige élastiqueAjustement par le « modèle du ver », module d'Young, énergie de flexion d'une tige et longueur de persistance, comparaison avec la chaîne librement jointe.
Difficile. Le rapport donne une moyenne de 6,14 sur 20 et un taux moyen de réussite d'environ 27 % aux questions abordées, les parties B.2, C.3 et C.4 ayant posé le plus de difficultés.
L'épreuve en chiffres
Moyenne 6,14 / 20 · 456 copiesAfficher ou masquer la section
L'épreuve en chiffres
- Moyenne
- 6,14/ 20
- Copies
- 456
- 1er quartile
- 3,32
- Médiane
- 5,43
- 3e quartile
- 7,85
Source : rapport du jury. Notes publiées par le concours (après harmonisation le cas échéant). Courbe : estimation par une loi normale.
Ce qu'a observé le jury
6 erreurs relevéesMagnétisme de la bille mal maîtrisé · Pendule inversé : équilibre instable · Moyenne, variance et écart type confondusAfficher ou masquer la section
Ce qu'a observé le jury
6 erreurs relevéesLe problème a bien discriminé les candidats : en moyenne, la moitié du sujet a été abordée et certains l'ont traité en entier de façon satisfaisante. La partie A a été la plus abordée et la mieux réussie, sauf la sous-partie A.1 sur le magnétisme. Le jury relève des lacunes sur des domaines fondamentaux (magnétisme, optique, élasticité) et une rédaction souvent trop brute.
Les erreurs les plus sanctionnées
- 1Magnétisme de la bille mal maîtriséA.1
La sous-partie A.1 a un taux de réussite anormalement faible : calculs déstabilisants en début de problème et réflexion attendue sur un matériau super-paramagnétique.
« réflexions plus fines sur les caractéristiques d'un matériau super-paramagnétique »
- 2Pendule inversé : équilibre instableQ12 à Q15
Sur des questions de mécanique très basiques, beaucoup écrivent une énergie potentielle rendant l'équilibre instable, puis une équation différentielle de signe opposé présentée comme celle d'un oscillateur harmonique.
« a proposé une expression de l'énergie potentielle où la position d'équilibre était instable »
- 3Moyenne, variance et écart type confondusQ18, Q19
L'estimation de la force à partir de l'histogramme des positions de la bille a souvent échoué pour cette raison.
« notamment à cause de confusions entre moyenne, variance et écart type »
- 4Longueur bout à bout et allongementQ35
Avec 9 % de réussite, la question a montré que la spécificité de l'ADN, élastique avant d'être complètement étiré, a rarement été comprise.
« les candidats ont confondu la longueur bout à bout de l'ADN avec son allongement »
- 5Facteur 1/2 perdu dans l'énergieQ54
Le travail infinitésimal n'a pas été correctement intégré pour obtenir l'énergie potentielle.
« causant la perte d'un facteur 1/2 »
- 6Questions de cours traitées sans rigueur
Contre toute attente, les questions de restitution de connaissances sont un peu moins réussies que les autres, faute de soin et d'explications.
« qui sont parfois traitées sans la rigueur nécessaire et qui manquent de soin »
Ce qui a été bien réussi
- Les questions 22 à 24 sur l'analyse de Fourier ont été réussies à 85 % par les candidats qui les ont abordées.
- La partie A est la plus abordée et la mieux réussie.
- Les premières questions des parties B et C ont été abordées par un bon nombre de candidats avec un certain succès.
Conseils du jury
- Justifier explicitement toutes les étapes de calcul et les conditions des simplifications.
- Présenter des schémas lisibles et complets, avec des indications explicites.
- Expliciter les raisonnements plutôt que donner des résultats bruts : le soin est valorisé et son absence pénalisée.
- Traiter les questions de cours avec la même rigueur que les autres.
- Vérifier la stabilité d'un équilibre et le signe de l'équation obtenue avant de conclure.
Synthèse rédigée par WikiPrépa à partir du rapport officiel du jury (à télécharger en PDF). Les citations sont extraites du rapport.
Description
Sujet officiel Agrégation externe en physique, session 2025.
Ces sujets peuvent vous intéresser
Pas encore de corrigé pour ce sujet : voici des sujets proches corrigés.
 Sujet proche avec corrigéX ENS Physique MP 2025X-ENS · 2025Corrigé
- Même épreuve, 2026Agrégation physique externe 2026, épreuve 3Agrégation · 2026Sujet seul
- Même sessionAgrégation physique externe 2025, épreuve 1Agrégation · 2025Sujet seul
 Sujet proche avec corrigéBanque PT Physique A PT 2025Banque PT · 2025Corrigé
- Même épreuve, 2024Agrégation physique externe 2024, épreuve 3Agrégation · 2024Sujet seul
- Même sessionAgrégation physique externe 2025, épreuve 2Agrégation · 2025Sujet seul
- Sujet proche avec corrigéBanque PT Physique B PT 2025Banque PT · 2025Corrigé
- Même épreuve, 2023Agrégation physique externe 2023, épreuve 3Agrégation · 2023Sujet seul
- Même sessionAgrégation biologie externe 2025, épreuve 1Agrégation · 2025Sujet seul
 Sujet proche avec corrigéCCINP Physique MP 2025CCINP · 2025Corrigé
- Même épreuve, 2021Agrégation physique externe 2021, épreuve 3Agrégation · 2021Sujet seul
- Même sessionAgrégation biologie externe 2025, épreuve 2Agrégation · 2025Sujet seul
Lecture du sujet en ligne
L'énoncé complet, avec les formules et les figures, sans ouvrir le PDF.Afficher ou masquer la section
Lecture du sujet en ligne
Egalité
Fraternité
AGREGATION
CONCOURS EXTERNE
Section : PHYSIQUE-CHIMIE
Option : PHYSIQUE
PROBLÈME DE PHYSIQUE
Le fait de rendre une copie blanche est éliminatoire
INFORMATION AUX CANDIDATS
Manipulation de macromolécules uniques
Définition de la transformée de Fourier
Formules physiques
Champ magnétique créé en
Le module de Young, aussi appelé module d'élasticité (longitudinale) ou module de traction est la constante qui relie la contrainte de traction (ou de compression) et la déformation de faible amplitude d'un matériau élastique isotrope. Il intervient dans la loi d'élasticité qu'on appelle loi de Hooke. Dans le cas d'une tige de longueur au repos
A. Fonctionnement du dispositif
A.1. Piégeage de la bille magnétique
A.1.1. Création du champ magnétique
- 1.Donner l'expression de l'énergie potentielle
E_p d'un dipôle magnétiqueM⃗ dans un champ magnétiqueB⃗ . Donner les expressions du momentΓ⃗ et de la forceF⃗ subis par le dipôle magnétiqueM⃗ , préciser dans quelles conditions la force est non nulle.
- 2.Réaliser un schéma de la géométrie du problème, incluant les dipôles
M⃗_1 etM⃗_2 . Exprimer le champ magnétiqueB⃗ au pointO en fonction de la distanced entre les aimants. - 3.On considère maintenant un point
P , toujours à égale distance des aimants, mais situé à un niveau vertical différent, en position(0, z) par rapport au repère choisi.
Déterminer l'expression du champ magnétique enP en fonction ded etz .
Déterminer à quelle(s) distance(s)z de l'origineO le champ magnétique s'annule.
A.1.2. Bille superparamagnétique
- 4.- Donner les définitions d'un matériau magnétique (i) linéaire, (ii) homogène, (iii) isotrope.
- -Écrire, dans un tel milieu, la relation entre le champ magnétique
B⃗ qui règne dans le matériau, l'excitation magnétiqueH⃗ et l'aimantationM⃗ du matériau. Préciser la définition de ces grandeurs et leurs unités usuelles.
- -Écrire, dans un tel milieu, la relation entre le champ magnétique
- 5.Définir la susceptibilité magnétique
χ_m et donner son expression approchée lorsque l'aimantation permanente du matériau est nulle et que les valeurs deM etH sont suffisamment faibles pour que l'on puisse se limiter au terme d'ordre 1 dans le développement limité deM en fonction deH .
- -Montrer que, dans ces hypothèses, on peut écrire
B⃗ = μH⃗
et exprimerμ , la perméabilité magnétique du matériau, en fonction deχ_m , sa susceptibilité magnétique et deμ_0 .
On s'intéresse maintenant à la relation entre l'aimantationM⃗ et le champH⃗ . Nous admettrons queM⃗ = χ_m H⃗ .
- -Montrer que, dans ces hypothèses, on peut écrire
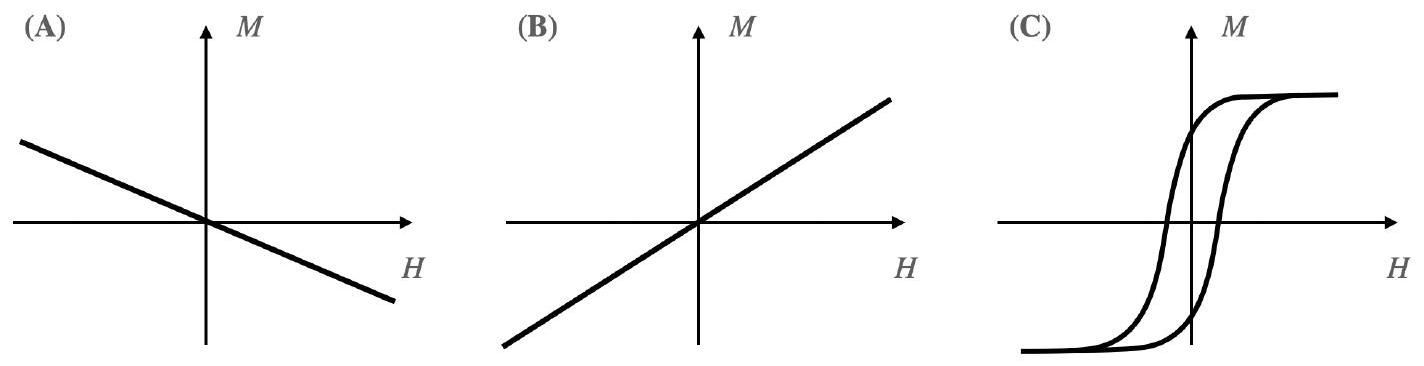
- 6.La Figure 3 montre les réponses magnétiques
M(H) associées à différentes classes de matériaux magnétiques. Associer chacune des courbes (A), (B) et (C) avec une des classes de matériaux suivants en justifiant votre réponse par une description du comportement associé :- -matériaux ferromagnétiques (FM),
- -matériaux diamagnétiques (DM),
- -matériaux paramagnétiques (PM).
- 7.Expliquer pourquoi, si l'on observe, en champ extérieur magnétique nul, le comportement magnétique de la nanoparticule sur des temps de mesure
τ_(mes)≫τ , l'aimantation moyenne de la particule mesurée sera nulle, en champ extérieur nul : on est alors dans le régime superparamagnétique. Justifier la référence au paramagnétisme dans le nom de ce régime. - 8.Dans le cas contraire,
τ_(mes)≪τ , l'aimantation mesurée a une valeur non nulle : la particule peut être assimilée à un moment magnétique fixe et elle est alors dite « bloquée ».
Pour unτ_(mes) donné, déterminer la température de blocageT_B correspondante et préciser dans quelles conditions la particule est bloquée. - 9.On mesure par d'autres moyens
K ≃ 350 kJ/m^3 et la valeur deln(τ_(mes)/τ_0) ≃ 20 . On veut disposer de billes ayant un moment magnétique bloqué à température ambiante. Quelle doit être la taille des nanoparticules?
A.1.3. Force magnétique sur la bille
- 10.En tenant compte des éléments discutés ci-dessus, tracer schématiquement la réponse magnétique d'une bille superparamagnétique et comparer avec les réponses décrites en Figure 3.
- 11.On considère une bille micrométrique superparamagnétique soumise à un champ magnétique
B⃗ . Si la valeur deB⃗ est suffisamment élevée pour que l'aimantation de la bille arrive à sa valeur de saturation, on peut montrer que l'énergie potentielle de la bille s'écrit
E_p(B) = − 1/2m⃗_(sat) ⋅ B⃗. - -En déduire la force
F⃗ subie par la bille dans ces conditions. - -Dans une expérience typique, l'intensité du champ magnétique
B⃗ vaut environ 0, 5 T au milieu des aimants et décroît jusqu'à zéro sur une distance d'environ 5 mm. Le moment magnétiquem⃗_(sat) de la bille à saturation est de l'ordre de10^(− 12) A ⋅ m^2 . Déterminer l'ordre de grandeur de la force agissant sur la bille.
- -En déduire la force
A.2. Mesures de force
A.2.1. Modèle de pendule inversé
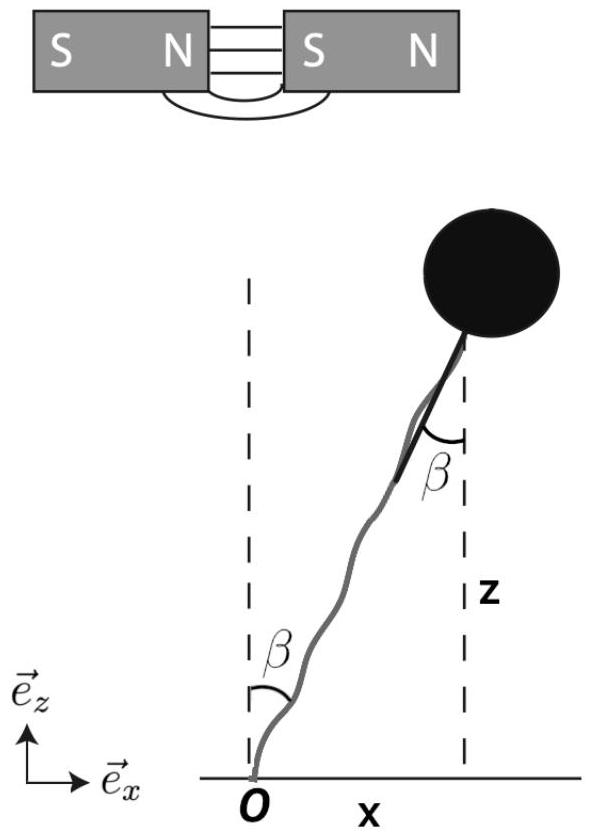
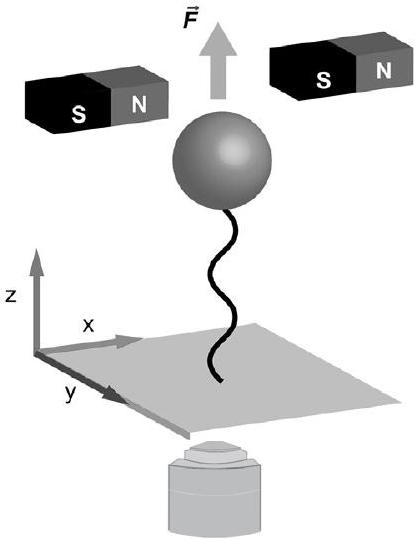
- 12.- Identifier et exprimer l'ensemble des forces agissant sur la bille, puis écrire les conditions d'équilibre mécanique du système en faisant référence à la configuration de la Figure 4.
- -Trouver la position d'équilibre de la bille (l'exprimer en fonction de l'angle
β ) et la justifier par une démonstration.
- -Trouver la position d'équilibre de la bille (l'exprimer en fonction de l'angle
- 13.Le vecteur unitaire normal à la trajectoire et dirigé du point de suspension du pendule vers la bille, sera noté
e⃗_r . Le vecteur unitaire tangent à la trajectoire et orienté dans le sens trigonométrique, sera notée⃗_θ .- -Écrire le principe fondamental de la dynamique pour la bille dans le repère identifié par ces vecteurs.
- -En déduire une équation différentielle pour l'angle
β(t) , puis une expression pour la tension du filF⃗_t en fonction deβ, β˙ et des paramètres du problème.
- 14.Toujours dans la configuration de la Figure 4 écrire l'énergie potentielle
E_p du pendule inversé, son énergie cinétiqueE_c et son énergie mécaniqueE_m(β, β) . Expliquer pourquoi la tension de l'ADNF⃗_t ne travaille pas. En déduire une équation différentielle pourβ . Comparer au résultat de la question 13. - 15.Par un développement limité (dont on explicitera l'expression), simplifier l'équation obtenue dans le cadre de petits angles. Nommer l'équation obtenue.
- 16.Dans l'expérience réelle avec la molécule d'ADN, en présence de solvant et à température donnée, on peut observer l'angle
β osciller autour de sa valeur d'équilibre. Énoncer et décrire le(s) phénomène(s) physique(s) qui permet(tent) d'expliquer cet effet.
A.2.2. Fluctuations thermiques
- 17.Effectuer un développement limité pour exprimer l'énergie potentielle
E_p(β) du pendule inversé dans le cas de petites fluctuations,β≪1 . En déduire une expression de cette énergie potentielle en fonction de la coordonnéex de la bille,E_p(x) , toujours dans le cas de petites fluctuations. Quelle est la nature de la force qui détermine le mouvement horizontal de la bille?
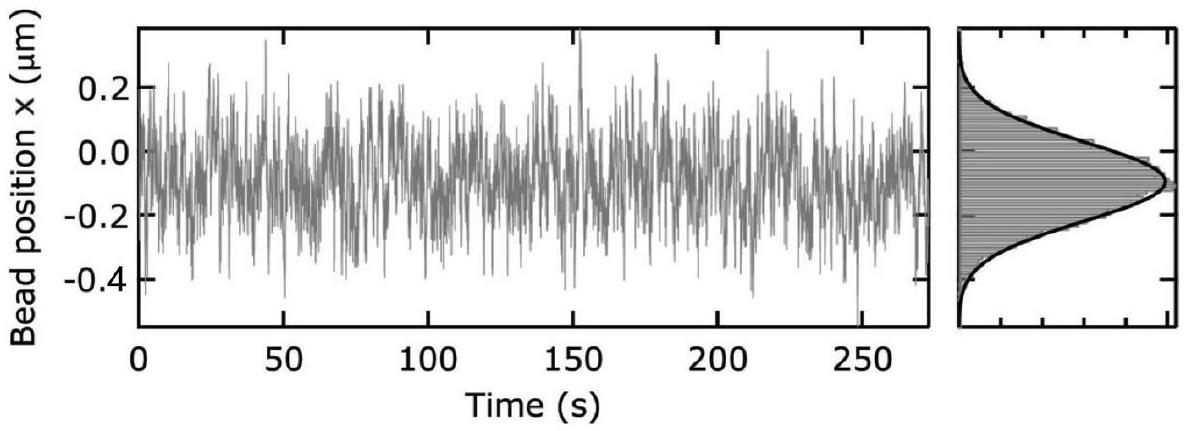
- 18.On réalise une expérience de pinces magnétique sur une molécule d'ADN et on enregistre les données de la Figure 5. Expliquer comment il est possible, à partir des données de la figure, de déterminer l'intensité de la force magnétique
F⃗ qui s'exerce sur la bille. Montrer que l'intensité recherchée est donnée par
F = (Lk_B T)/(⟨x^2⟩)
où⟨x^2⟩ est la valeur quadratique moyenne de la positionx (et, on le rappelle,T est la température etL la longueur de la molécule d'ADN). - 19.En se basant sur les données de la Figure 5, donner un ordre de grandeur de la force magnétique
F sur la bille lors de l'enregistrement. L'expérience est réalisée avec une molécule d'ADN de longueurL ≃ 16, 5μ m . - 20.Justifier le fait que l'histogramme des position
P(x) puisse être ajusté par une fonction gaussienne.
A.2.3. Analyse de Fourier
21. Décrire la signification de chaque terme de l'Équation 2.
22. Écrire la transformée de Fourier de l'Équation 2, après l'avoir simplifiée. En déduire une expression pour
23. On note
Montrer que l'on peut écrire
24. En sachant que la force aléatoire
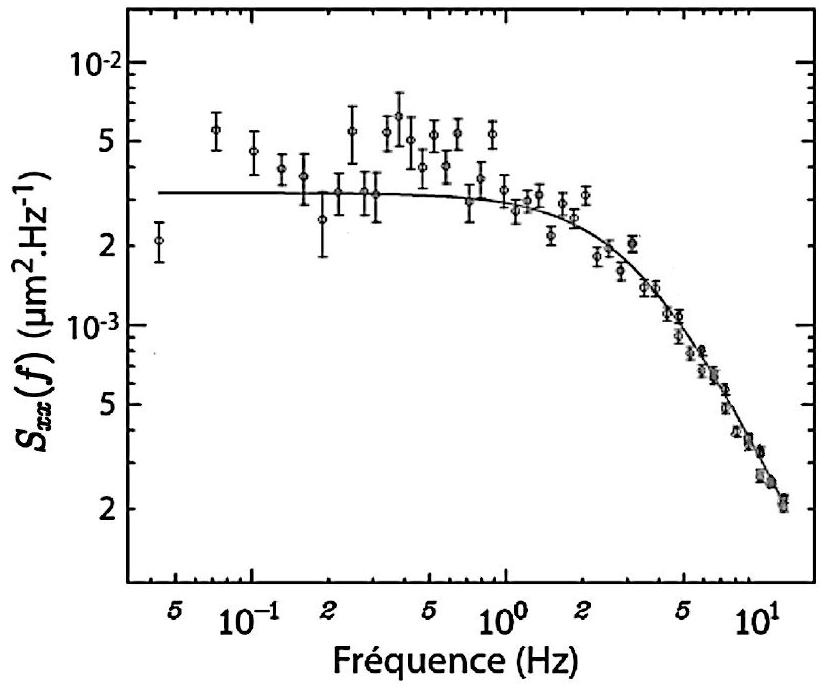
25. Donner une estimation du coefficient
26. - Identifier et estimer la fréquence de coupure
- -En déduire une estimation de la force
F qui s'applique sur la bille dans le cas de l'expérience de la Figure 6. - -Comparer ce résultat à l'ordre de grandeur de la force trouvée avec une méthode moins précise à la question 19.
A.3. Mesures de position
A.3.1. Position horizontale
- 27.- Définir le cadre de la diffraction de Fraunhofer, encore nommée diffraction en champ lointain ou approximation de Fraunhofer.
- -Dans l'expérience, la diffraction est due à une pupille circulaire de rayon
a : décrire ce qu'on observe à l'écran dans le cas d'une diffraction de Fraunhofer. Faire un dessin schématique, donner le nom de la figure de diffraction obtenue.
- -Dans l'expérience, la diffraction est due à une pupille circulaire de rayon
- 28.Dans le cas de l'expérience des pinces magnétiques, l'objet diffractant n'est pas une ouverture dans un écran, mais la bille magnétique. Expliquer les analogies et différences par rapport au cas discuté plus haut d'une ouverture circulaire, dans l'hypothèse d'un montage optique identique et en considérant la bille comme un objet opaque.
- 29.Dans l'expérience, une lentille mince de focale
f^′ est utilisée pour former l'image de la bille sur le plan de la caméra CCD, qu'on suppose coïncidant avec le plan focal image. Exprimer le diamètred_1 de la première frange noire à l'écran en fonction des paramètres du problème. - 30.L'ouverture de la pupille est
a = 10μ m . On éclaire le système à l'aide d'une LED rouge. L'image enregistrée par la caméra CCD est formée de pixels carrés de10μ m de côté. Déterminer la focalef^′ qu'il conviendrait de choisir pour pouvoir observer l'image dans ces conditions, en supposant que l'objectif travaille dans l'air (« objectif sec »).
A.3.2. Position verticale
Positionnement de la bille le long de l'axe vertical
Lorsque la bille est légèrement hors plan focal, elle apparaît entourée d'une série de cercles concentriques (figure a).
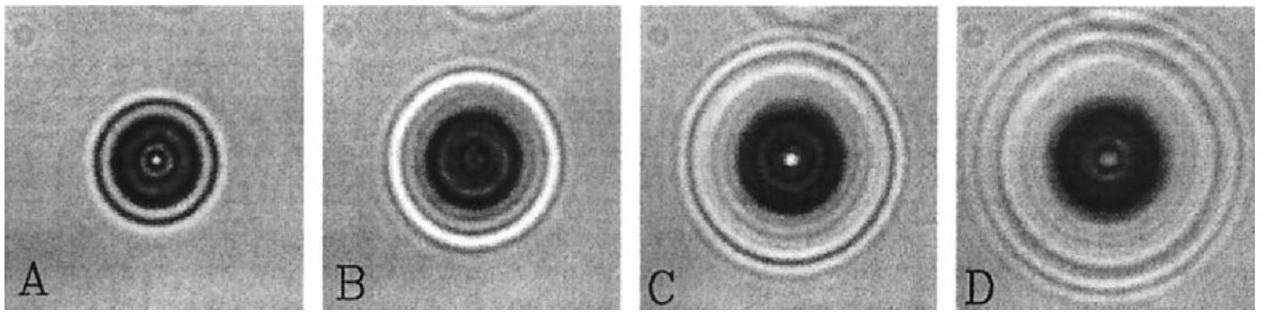
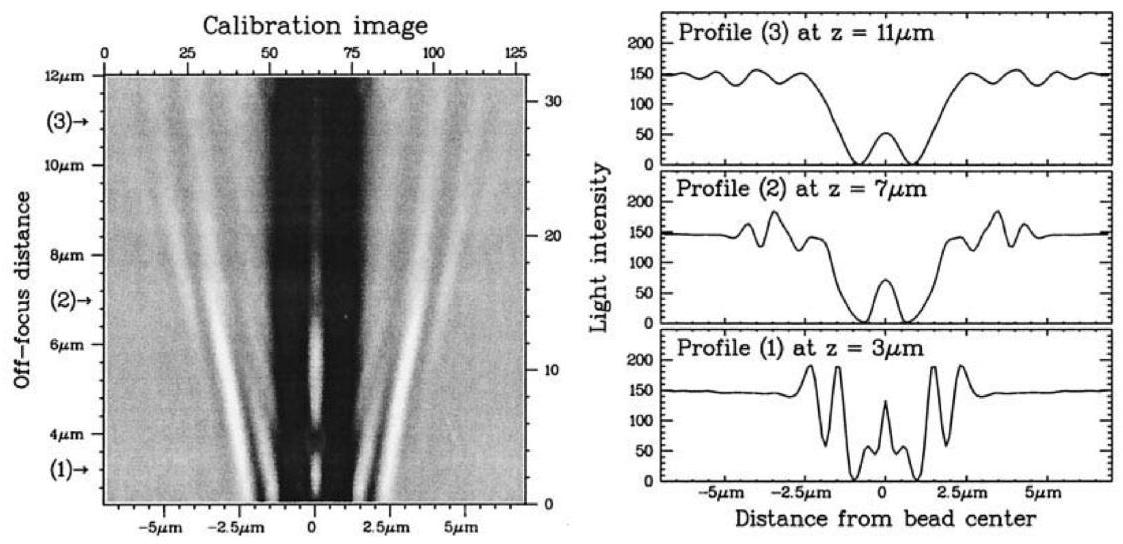
- 31.En suivant le document scientifique 1, les profils radiaux des images enregistrées lors d'une expérience peuvent être comparés à ceux obtenus lors de la phase d'échantillonnage grâce à un ajustement par la méthode des moindres carrés. Décrire cette méthode dans le cas général : donner son objectif, le principe de la méthode, expliciter la fonction
S qui doit être minimisée et par rapport à quelles variables on doit minimiser. - 32.Dans le cas de l'expérience, quelle grandeur joue le rôle des ou de la variable par rapport à laquelle on minimise
S ?
- Le script Python suivant, incomplet, permet de définir une fonction qui prend en entrée une série de mesures
{x_i, y_i} et une fonctionf(x, A) dépendant d'un paramètreA et réalise un ajustement de la fonction aux mesures par la méthode des moindres carrés.
def moindres_carre(mesures, func, initial_param, step=0.01, tolerance=1e-6):
    xdata, ydata = mesures
    A = initial_param
    quantite_prec = .............................
    while True:
        A += step
        quantite_actu = ..............................
        if abs(quantite_actu - quantite_prec) < tolerance:
            break
        quantite_prec = quantite_actu
    return A
- -Compléter la fonction en écrivant les expressions appropriées dans les espaces indiqués par les points.
- -Comment une modification de la valeur du paramètre step affecte-t-elle le processus d'optimisation? Quelles peuvent être les conséquences négatives d'une valeur trop élevée ou trop basse?
B. Élasticité de l'ADN
B.1. Un comportement élastique
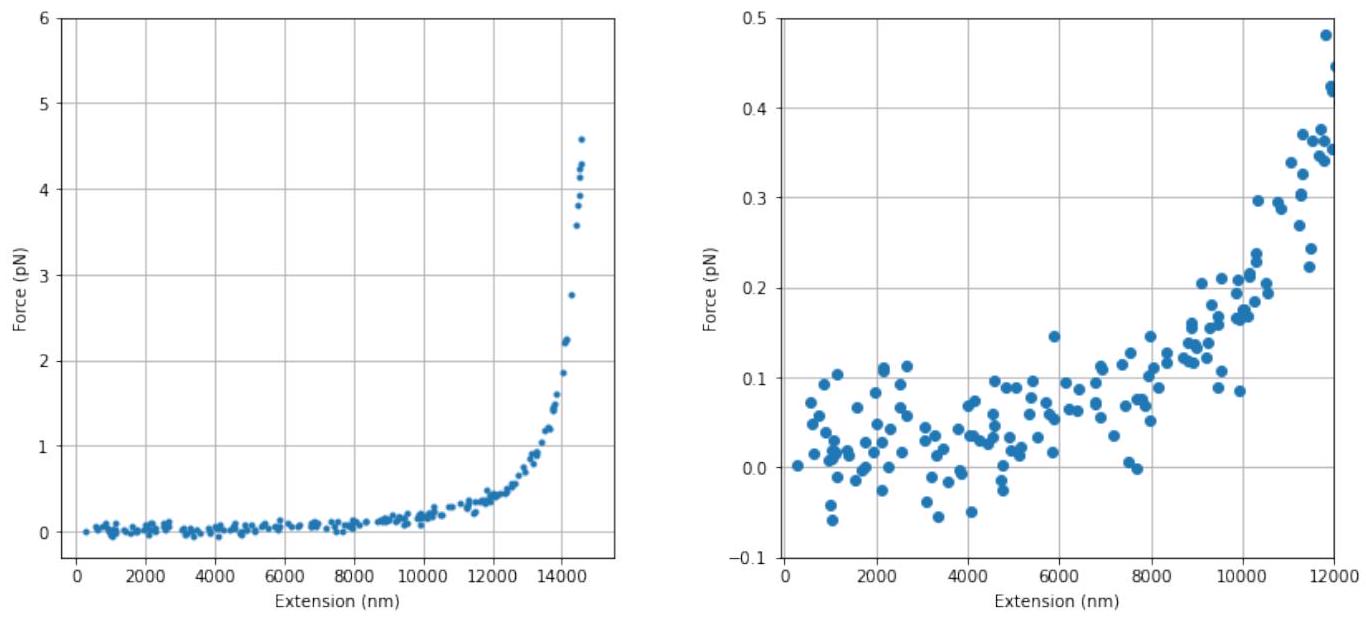
- 34.Justifiez l'existence d'un régime élastique pour l'ADN pour des forces suffisamment faibles sur la base de la Figure 7. Donner une estimation grossière des forces et extensions pour lesquelles ce régime est observé. Montrer que l'ordre de grandeur pour la constante de raideur associée à ce régime élastique est de quelques
10^(− 8) S.I. - 35.En comparant l'extension typique du régime linéaire avec la longueur étirée
L de la molécule d'ADN, justifier la nécessité d'un modèle spécifique pour expliquer ce comportement élastique.
B.2. Élasticité entropique
Dans la version unidimensionnelle (1D) de ce modèle, que nous allons étudier maintenant, les monomères n'ont que deux orientations possibles : dans la direction de la force appliquée, ou dans la direction opposée (Figure 8, droite).
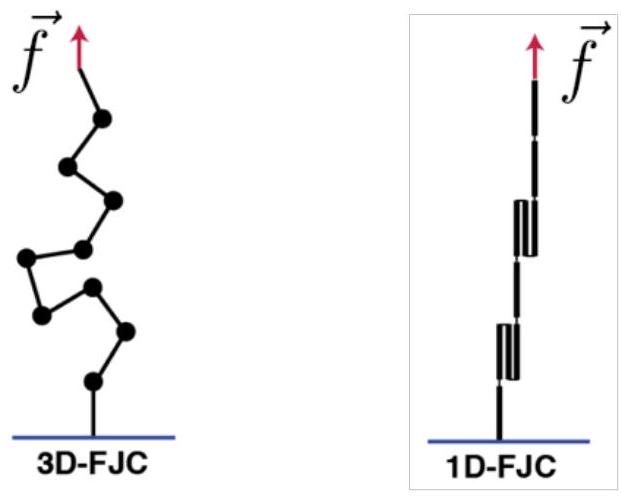
- 36.- Exprimer l'extension globale du polymère,
z , pour une configuration donnée (plus ou moins désordonnée).- -Déterminer la valeur moyenne
⟨z⟩ de l'extensionz , en absence de force, àf = 0 . - -Montrer que la variance
⟨z^2⟩ , c'est-à-dire la valeur moyenne du carré dez , s'écrit, toujours dans le cas oùf = 0 ,
⟨z^2⟩ = ℓL.
- -Déterminer la valeur moyenne
- 37.Clarifier la similitude entre la formule
⟨x^2⟩ = 2Dt pour une marche aléatoire 1D et l'expression de⟨z^2⟩ dans le modèle de chaîne librement jointe, en précisant les relations entre les grandeursN, ℓ, δx, ⟨z^2⟩ et⟨x^2⟩ .
- 38.On applique une force d'étirement
f constante. L'extension mesurée de la chaîne se stabilise àz > 0 . Donner l'expression du travail effectué par la forcef pour étirer le polymère de sa longueur initiale jusqu'àz . En déduire une expression pour l'énergie potentielleU du système à l'état étiré.
- 39.- Déterminer la probabilité qu'un monomère soit orienté dans la direction
+ e⃗_z et celle qu'il soit orienté selon− e⃗_z .- -En déduire l'orientation moyenne des monomères,
⟨z_i⟩ . L'exprimer en utilisant une fonction hyperbolique.
- -En déduire l'orientation moyenne des monomères,
- 40.Utiliser le résultat précédent pour déterminer
⟨z⟩ , l'extension moyenne de la chaîne à l'équilibre. Tracer⟨z⟩/L en fonction defℓ/k_B T . - 41.- Décrire le comportement de la chaîne dans la limite des grandes forces
fℓ/k_B T≫1 . Déterminer dans quelle mesure ce comportement peut être considéré comme réaliste.- -Déterminer le comportement de la chaîne dans la limite des petites forces
fℓ/k_B T≪1 .
- -Déterminer le comportement de la chaîne dans la limite des petites forces
- 42.Exprimer la force
f⃗_(ADN) que la molécule d'ADN exerce sur l'opérateur en présence d'une faible force extérieuref et en conditions d'équilibre. Commenter l'expression «élasticité entropique» utilisée pour ce régime. - 43.Dans le régime de force faible, on peut associer une constante élastique effective
k_(ADN)^(1D) à la chaîne polymère. Déterminer cette constante et en vérifier l'homogénéité.
- 44.Justifier l'Équation 5, en précisant le choix du système de coordonnées effectué.
- 45.- Écrire explicitement l'expression générale du facteur de normalisation (ou fonction de partition)
Z .- -Montrer ensuite que
Z peut s'écrire
Z = (∫_0^(2π) dφ∫_0^π sinθdθexp((fℓcosθ)/(k_B T)))^N
- -Montrer ensuite que
- Montrer, à partir de l'Équation 6 et de l'Équation 7, que
Ce calcul requiert plusieurs étapes intermédiaires.
47. Comparer les limites de faible et grande force de l'expression Équation 8 avec ceux de la version 1D du modèle (question 41 notamment). Montrer que la constante élastique associée au régime élastique dans le modèle 3D est
B.3. Élasticité entropique : thermodynamique
48. - Dans le cas de force nulle les orientations sont aléatoires. Déterminer le nombre de configurations différentes correspondant à cet état.
- -Dans le cas d'une force suffisamment élevée, tous les monomères s'orientent dans le sens de la force. Déterminer le nombre de configurations différentes correspondant à cet état.
- -En utilisant la définition statistique de l'entropie, donner l'entropie pour chacun de deux états considérés aux deux conditions précédentes,
S_(f = 0) etS_(f≫f_0) , oùf_0 = k_B T/ℓ . - -Faire l'application numérique pour
N = 100 .
49. - Expliquer pourquoi l'énergie interne
- -Déduire l'expression de l'énergie libre
F du système. - -Justifier la relation suivante entre la force
f et l'extensionz : f = (∂F)/(∂z) . - -En déduire une relation force-extension valable pour des forces suffisamment faibles.
- -Comparer avec les résultats trouvés dans la sous-section B.2.
C. Modélisation de l'ADN comme une longue tige flexible
C.1. Ajustement avec le « modèle du ver »
- 50.Par un développement limité à l'ordre 1, montrer que pour des faibles valeurs de
z/L le comportement du « modèle du ver » est élastique, de constante élastiquek_(ADN)^(3D) (Équation 9). - 51.Un ajustement des données de la Figure 7 par le module de l'Équation 11 permet d'obtenir l'estimation
k_(ADN)^(3D) ≃ (7, 70 ± 0, 40) × 10^(− 6)pN ⋅ nm^(− 1) .- -Déduire une estimation du paramètre
ℓ . - -Attribuer une incertitude à cette estimation.
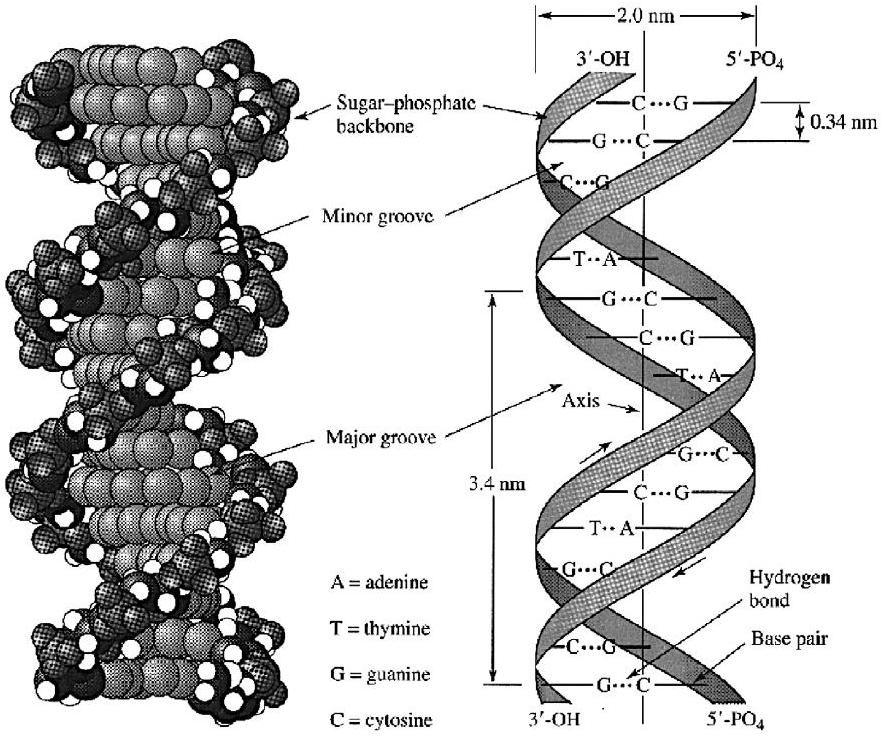
- -En comparant avec la Figure 1, estimer grossièrement le nombre
n_ℓ de paires de bases qui constituent un segment d'ADN de longueurℓ .
- -Déduire une estimation du paramètre
C.2. L'ADN comme une tige élastique : traction
- 52.Préciser l'unité usuelle du module de Young
Y (définition en préambule). Justifier qu'il peut être assimilé à l'énergie par unité de volume qui assure la cohésion d'un matériau et en donner une interprétation microscopique. - 53.Les métaux et les verres cristallins sont maintenus ensemble par des liaisons covalentes dont l'énergie est de l'ordre de l'eV, à une densité de l'ordre d'une liaison par angström cube. Trouver le module d'Young typique d'un cristal à liaisons covalentes et comparer avec les valeurs données dans le Tableau 1.
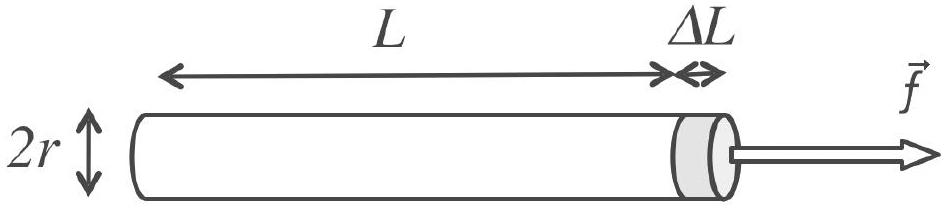
- 54.- Déterminer l'énergie
E_(etirem) associée à l'étirementΔL du cylindre en fonction des données du problème.- -En déduire une expression de l'énergie d'étirement par unité de volume
e_(etirem) , sous la forme
e_(etirem) = α((ΔL)/L)^2,
avecα une constante que l'on précisera.
- -En déduire une expression de l'énergie d'étirement par unité de volume
C.3. Flexion et longueur de persistance
C.3.1. Énergie de courbure
| Matériau |
|
| Caoutchouc (faible contrainte) | 0,01-0,1 |
| Plastiques | 0,2-5 |
| Bois | 10 |
| Os cortical humain | 14 |
| Verre | 50-90 |
| Aluminium | 69 |
| Cuivre | 117 |
| Acier | 200 |
| Tungstène | 400 |
| Diamant | 1050-1200 |
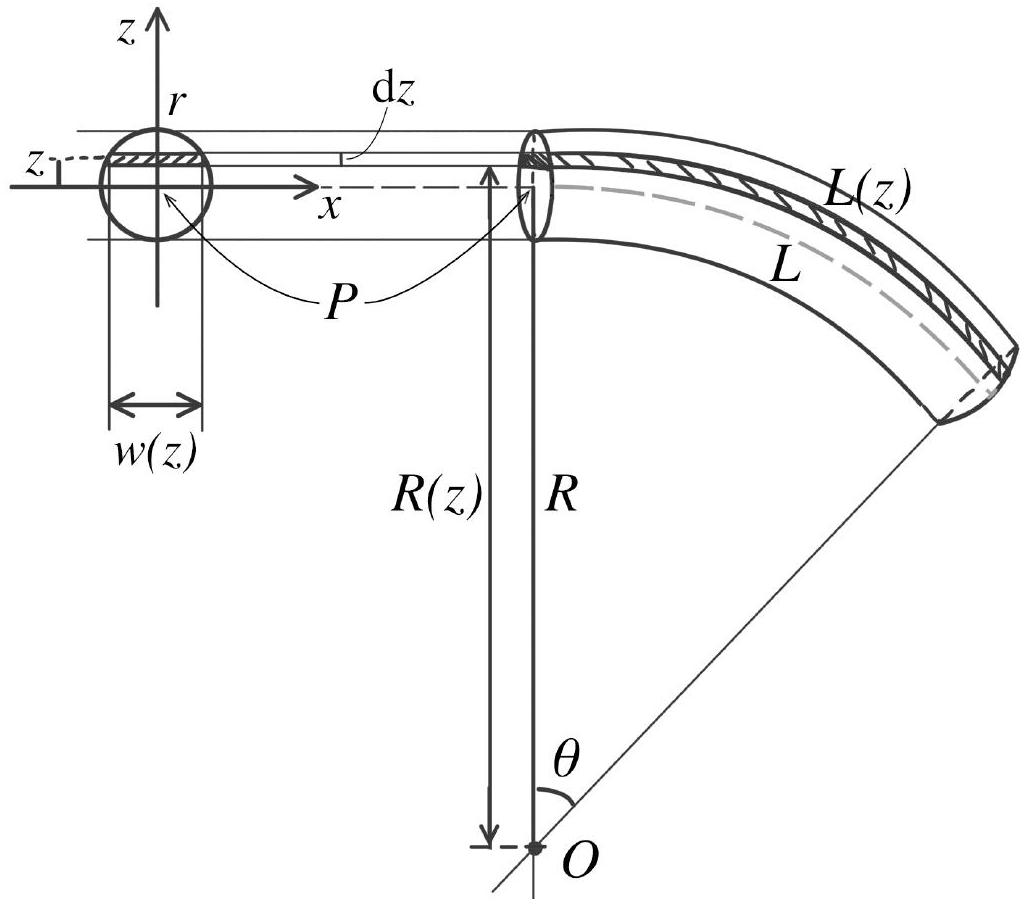
- 55.Déterminer la largeur
w(z) de la tige à la hauteurz .
En déduire le volumedv(z) de la tranche de tige comprise entre les hauteursz etz + dz . Pour cette question, on néglige toute variation de la longueurL avecz . - 56.Déterminer la longueur
L(z) de la tranche de tige de hauteurz et en déduire l'allongementΔL(z) correspondant. - 57.En intégrant
e_(etirem) sur tout le système, montrer que l'énergie de courbure de la tige s'écrit
E_(flexion) = 1/2B1/(R^2)L,
AvecB une constante que l'on exprimera sous la formeB = κY .
Certains éléments de calcul sont donnés en préambule. - 58.En s'appuyant sur les données de la Figure 1 montrer que, pour l'ADN, la constante
κ vaut0, 78 × 10^(− 36) S.I. - 59.Discuter la dépendance de la rigidité d'une tige élastique de son diamètre. Par exemple, quelle serait la rigidité de l'ADN si son diamètre devait doubler?
- 60.Déduire de l'Équation 12 une expression pour l'énergie de courbure par unité de longueur,
e_(flexion) , en fonction deR . L'exprimer ensuite en fonction de l'angle du secteur circulaireθ (voir Figure 10).
C.3.2. Fluctuations thermiques
- 61.Évaluer l'amplitude angulaire
√(⟨θ^2⟩) des fluctuations spontanées d'une tige élastique dues à un mouvement thermique en utilisant le théorème d'équipartition. Determiner l'expression de la longueur caractéristiqueL = L_P pour laquelle ces fluctuations sont de l'ordre de1rad^2 à température ambiante.
La longueurL_P s'appelle longueur de persistance.
C.4. Retour sur le « modèle du ver » et comparaison avec le modèle de chaîne librement jointe
- Tracer la fonction de corrélation du vecteur tangent en faisant apparaître toute grandeur utile à sa caractérisation.
- On définit le vecteur « bout-à-bout »
R⃗(L) qui relie un point du fil, dont la position est donnée par la variable curvilignes , à un autre point qui se trouve ens^′ tel que la distance curviligne entre les deux points estL = |s^′ − s| .
Justifier la relation suivante :
- La moyenne du module carré de
R⃗(L) peut s'écrire
65. Discuter les limites
66. - Déterminer la longueur
- -Donner une interprétation de ce résultat faisant le lien entre les propriétés mécaniques du modèle de tige élastique et les hypothèses sous-jacentes au modèle en segments rigides.
- -À partir des données experimentales on estime
ℓ ≃ 100 nm . Déterminer le module d'élasticité en flexionB et le module de YoungY de l'ADN. À quel type de matériaux peut-on comparer la rigidité de l'ADN ?
Questions fréquentes
4 questionsSur quoi porte le problème de physique de l'agrégation externe de physique 2025 ?Afficher ou masquer la section
Questions fréquentes
4 questionsSur quoi porte le problème de physique de l'agrégation externe de physique 2025 ?
Sur la manipulation d'une molécule d'ADN unique par pinces magnétiques : fonctionnement du dispositif, élasticité entropique de l'ADN par la physique statistique, puis modèle de tige élastique et longueur de persistance.
Quelle est la moyenne du problème de physique à l'agrégation de physique 2025 ?
Le rapport indique une moyenne de 6,14 sur 20 pour 456 copies, avec une médiane de 5,43 et des quartiles de 3,32 et 7,85.
Quelles erreurs le jury de l'agrégation physique 2025 a-t-il relevées au problème ?
Un équilibre instable pour le pendule inversé, des confusions entre moyenne, variance et écart type, la longueur bout à bout de l'ADN confondue avec son allongement et un facteur 1/2 perdu en intégrant le travail.
Quelles parties du problème de physique de l'agrégation 2025 étaient les plus difficiles ?
La sous-partie A.1 sur le magnétisme, la partie B.2 sur l'élasticité entropique de la chaîne librement jointe, et les parties finales C.3 (milieux continus) et C.4.
Pas de description pour le moment